突触生成:神经元如何建立连接与重塑大脑
突触生成贯穿发育与成年期,涉及轴突导向、突触分化、修剪与环路重塑。
突触生成是神经元建立突触连接的过程,既支撑早期神经发育,也持续终生并参与学习、记忆与神经可塑性。文章系统梳理了其关键环节:生长锥通过丝状伪足和板状伪足感知吸引与排斥分子线索,引导轴突到达目标;接触后,突触前细胞形成突触小泡与释放相关蛋白,突触后细胞形成受体与相关蛋白,完成双向的突触分化;发育期神经系统过度生成突触,再通过突触修剪选择性保留有效连接,精炼环路;成年大脑中的突触生成则更多表现为对已有环路的重塑,以回应经验与神经活动。文章强调,大脑可塑性由具体的细胞与分子事件支撑,理解突触生成的基本流程是把握更复杂脑功能的基础。
突触生成(Synaptogenesis)是神经元之间、以及神经元与其他细胞之间建立突触连接的过程。它既是神经系统发育的基础环节,也在人的一生中持续发生,参与学习、记忆和神经可塑性。换句话说,大脑并不是在发育完成后就固定布线,而是在经验与神经活动的驱动下不断调整连接。
轴突如何找到正确的目标
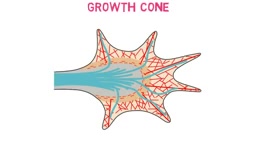
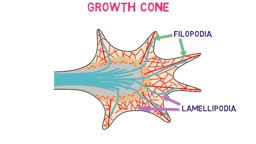
在早期神经发育中,正在生长的轴突往往朝着其他细胞延伸。生长中的轴突末端有一个特化结构——生长锥(growth cone),它负责引导轴突走向目标。
生长锥上伸出两类结构:指状的丝状伪足(philopodia)和片状的板状伪足(lamellipodia)。它们不断“采样”周围环境中的分子引导线索。有些线索吸引生长锥,有些则排斥它,二者共同作用让轴突沿着特定路径前进。这种吸引与排斥的平衡,是神经环路能够精确布线的关键机制之一。
生长锥是轴突末端高度动态的特化结构,由肌动蛋白骨架驱动其运动。丝状伪足是富含F-肌动蛋白的细长突起,通过不断伸展和收缩来探测周围环境;板状伪足则是较宽的片状结构,为生长锥提供前进的推力。生长锥表面分布着多种引导受体,如DCC、Robo、Eph等,它们分别识别Netrin、Slit、Ephrin等分泌型或膜结合型引导分子。这些受体介导的信号通路最终汇聚到Rho GTP酶家族(RhoA、Rac1、Cdc42),调控细胞骨架的重排,从而将化学信号转化为生长锥的转向行为。理解这一信号转导链条,是理解轴突如何精确导航的分子基础。
接触之后:突触分化
当生长锥到达目标细胞时,两个细胞表面的分子相互作用帮助建立接触,并启动突触生成。这一过程本质上是突触分化:双方细胞开始发育出突触通信所需的特化结构。
突触前细胞形成突触小泡以及参与神经递质释放的蛋白质;突触后细胞则形成神经递质受体和相关蛋白,从而搭建出功能性的突触。由于涉及两侧细胞各自装配不同的分子机器,突触生成并非单方面的“搭线”,而是双向的协同构建。
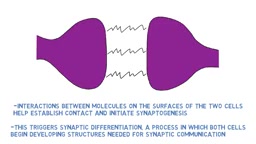
突触分化过程依赖跨突触黏附分子的相互作用,例如神经连接蛋白(neurexin)与神经配蛋白(neuroligin)的结合,以及突触细胞黏附分子(SynCAM)等。这些黏附分子不仅机械地连接两侧细胞,还通过胞内结构域招募支架蛋白(如PSD-95、SAP102),进而组织突触后致密区(PSD)的组装。此外,突触分化还涉及局部信号转导:突触前侧的蛋白激酶A和突触后侧的CaMKII等激酶被激活,驱动突触小泡簇集和受体锚定。这些分子事件的时间顺序与空间定位,决定了突触能否从初始接触成熟为功能性的连接。
多建再修剪:突触修剪的意义
在发育过程中,神经系统往往会产生比最终需求更多的突触。这些多余连接随后会通过突触修剪(synaptic pruning)被移除。修剪的作用是精炼神经环路,提升神经元之间通信的效率。
这一“先过度生成、再选择性保留”的策略,使得神经系统能够根据实际使用情况保留有价值的连接,淘汰不常使用的连接。不同来源的神经科学科普内容在描述这一机制时高度一致:突触修剪是发育期环路精炼的核心步骤,也是理解神经可塑性的重要切入点。
突触修剪的细胞与分子机制涉及胶质细胞的主动参与。在中枢神经系统中,小胶质细胞(microglia)通过补体系统(如C1q、C3)标记弱连接或多余突触,并利用补体受体CR3进行吞噬清除;星形胶质细胞则通过MEGF10和MERTK等吞噬受体参与修剪。这一过程具有活动依赖性:高频使用的突触倾向于被保留,而低活动突触更易被标记和移除。修剪异常与多种神经发育障碍相关,例如自闭症谱系障碍中被认为存在修剪不足或过度修剪的假说。因此,突触修剪不仅是环路精炼的步骤,也是理解脑疾病机制的重要窗口。
成年大脑中的突触生成
突触生成并非只发生在发育期。成年大脑中同样存在突触生成,但形式有所不同:它更多表现为对已有神经环路的重塑,以回应经验与神经活动,而不是早期发育中那种轴突生长与导向的过程。
这一区别值得关注。发育期的突触生成侧重“从无到有”地搭建连接,成年期的突触生成则侧重在既有网络上调整权重与结构。两者共同支撑了学习与记忆的持续能力,也解释了为什么经验能够改变大脑的连接方式。
成年期的突触生成在结构上主要表现为树突棘的动态变化。树突棘是兴奋性突触后膜上的微小突起,其形态(细长型、蘑菇型、粗短型)与突触强度密切相关。在学习和记忆过程中,新树突棘可在数分钟至数小时内形成,而原有树突棘可增大或缩小。这种结构可塑性依赖NMDA受体激活和肌动蛋白重塑,并受到神经营养因子(如BDNF)的调控。与发育期不同,成年期突触生成通常不涉及长距离轴突导向,而是在已有轴突末梢与树突之间局部重组。此外,成年神经发生(主要在海马齿状回)也能产生新的突触连接,但其对人类成年大脑的贡献仍存在争议。
理解突触生成的价值
从生长锥的导向,到突触分化,再到修剪与成年期的环路重塑,突触生成贯穿了神经系统构建与调整的完整链条。它提醒我们:大脑的可塑性不是抽象概念,而是由一系列具体的细胞与分子事件支撑的。对于关注学习机制、神经发育以及脑疾病研究方向的人来说,把握突触生成的基本流程,是理解更复杂脑功能的基础。